
植物免疫系统:进化博弈中的“Z字”防御蓝图
The plant immune system
本文提出了植物免疫系统的经典“Z字模型”(Zigzag Model),系统地阐述了植物如何通过PTI(PAMP激发免疫)和ETI(效应子激发免疫)两层防御机制与病原体进行进化博弈。该模型已成为植物病理学领域的基石。
TL;DR
在植物病理学的发展史上,Jonathan Jones 和 Jeffery Dangl 于 2006 年发表于 Nature 的这篇综述无疑是里程碑式的作品。它将零散的植物免疫现象归纳为**“Z字模型”(Zigzag Model)**,定义了植物免疫系统的两大支柱:PTI (PAMP-triggered immunity) 与 ETI (Effector-triggered immunity),并深刻揭示了植物与病原体之间周而复始的协同进化。
痛点深挖:为何植物不需要移动的白细胞?
与人类等哺乳动物不同,植物既没有在体内巡逻的移动免疫细胞,也没有适应性免疫系统(如抗体产生)。每个植物细胞必须具备独立识别病原体的能力。
早期的研究面临一个核心矛盾:病原体总是能产生特定的“效应子”(Effectors)来破坏植物的防御,而植物不仅需要识别通用的微生物特征(如细菌的鞭毛),还需要识别这些高度多样的致病因子。学术界迫切需要一个统一的逻辑框架来解释这种“魔高一尺,道高一丈”的动态平衡。
核心机制:Z字模型 (The Zigzag Model)
作者通过四阶段模型形象地展示了植物与病原体的博弈过程:
- Phase 1 - PTI:植物表面的模式识别受体(PRRs)识别病原体保守的 PAMPs(如 flagellin),触发基础免疫,停止大多数定殖。
- Phase 2 - ETS (Effector-triggered susceptibility):成功的病原体向植物细胞内分泌效应子,干扰 PTI 信号路径,使植物变得易感。
- Phase 3 - ETI:植物通过 NB-LRR 类蛋白识别特定的效应子。这种识别会触发比 PTI 更强烈、更迅速的免疫响应,往往伴随超敏反应(HR)——即受感染部位的细胞自杀,以“焦土政策”断绝病原体营养。
- Phase 4 - 协同进化:病原体丢失或变异该效应子以逃避监测,或进化出新的效应子抑制 ETI;植物转而进化出新的 R 基因,循环开始。
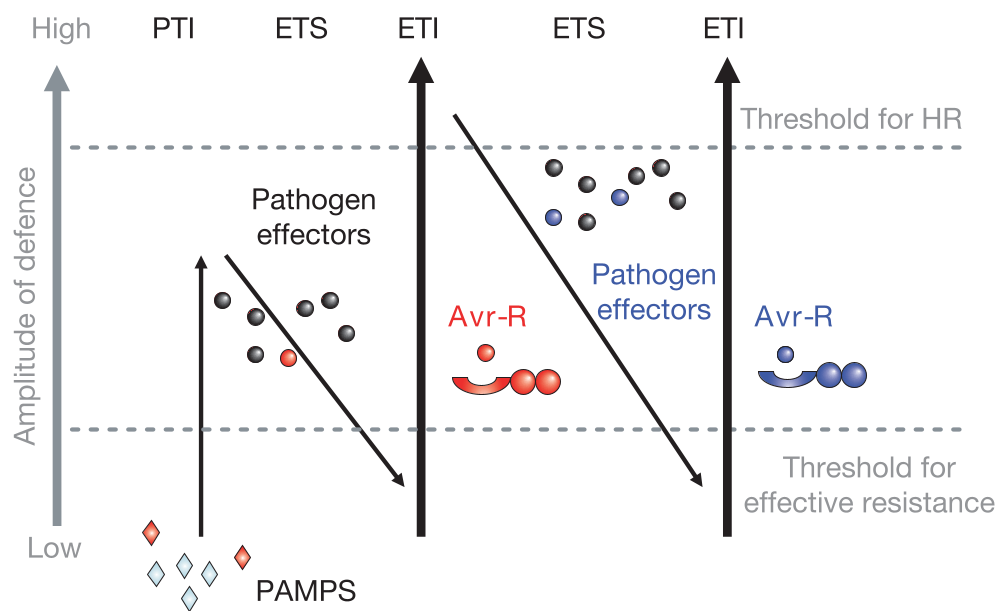 图中波段高度代表植物的防御强度,显示了 PTI 受到抑制(ETS)后再被 ETI 提升的过程。
方法论:守卫假说与“修饰自我”
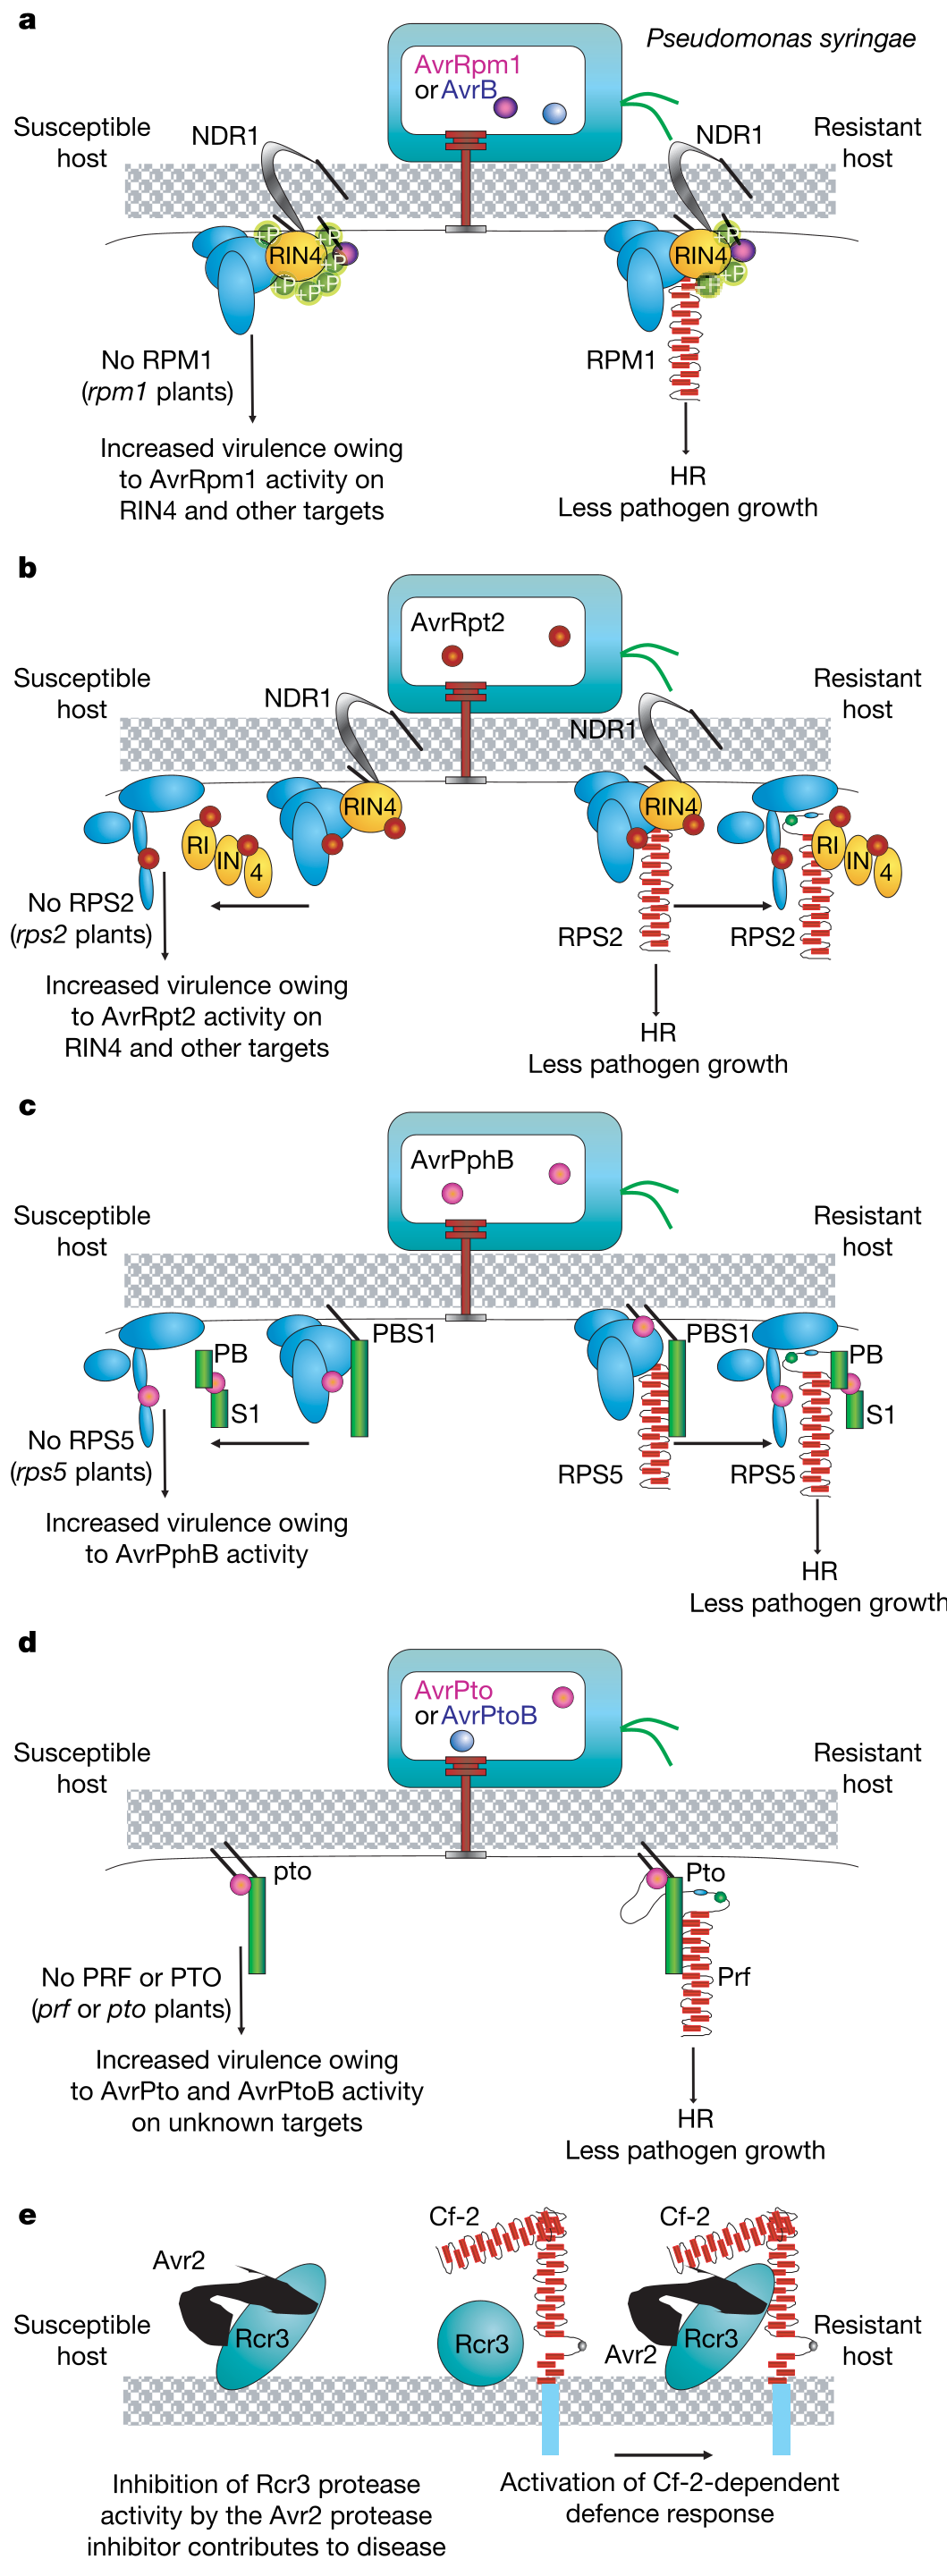
本文最深刻的技术洞察在于对 NB-LRR 蛋白 工作原理的解释。作者提出了著名的**“守卫假说”(Guard Hypothesis)**:
- 直觉:R 蛋白不一定直接结合病原体效应子(因为效应子变异太快,直接结合的进化压力太大)。
- 逻辑:R 蛋白“守卫”着植物自身的关键蛋白。当效应子攻击这些宿主蛋白(使其发生磷酸化或降解等修饰)时,R 蛋白感知到了这种“修饰的自我”(Modified-self),从而拉响警报。
- 案例:以 RIN4 蛋白为例(见下图),它是多个效应子的攻击目标。植物利用 RPM1 和 RPS2 两个 R 蛋白分别监测 RIN4 的不同修饰,实现了“以此一御彼多”的进化经济性。
实验战绩与科学洞察
- 信号收敛:研究通过
flg22(鞭毛蛋白片段)实验证明,不同的 PAMPs 诱导的转录组(约 1100 个基因)高度重合,说明 PTI 具有通用的通路。 - 非寄主抗性:剖析了为什么某些病原体无法感染特定物种,这通常是由于该物种具备多层预设的防御(如 PEN2/PEN3 介导的化学屏障)。
- 激素权衡:揭示了水杨酸(Salicylic Acid)与茉莉酸/乙烯(JA/Ethylene)之间的拮抗作用:前者对抗活体营养型病原体,后者对抗死体营养型病原体。
深度总结与展望
Jones 和 Dangl 的这项工作不仅描绘了植物免疫的宏观图景,更为后续几十年的抗病育种提供了路线图。
局限性与挑战: 尽管“Z字模型”极为经典,但它在处理**死体营养型(Necrotrophs)**病原体时显得力不从心。此外,近年来研究发现 PTI 和 ETI 并非孤立的波段,而是通过复杂的反馈回路紧密交织。
未来启示: 利用基因编辑或合成生物学,我们可以尝试在作物中构建“多重守卫”系统,或者通过重组 PRR 受体来增强基础抗性(PTI),从而减少农业生产对化学农药的依赖。