
重新定义 flu 突变体:剂量效应揭开单线态氧信号的新版图
A suppressor screen uncovers flu as a weak mutant and chloroplastic 1O2 triggers EX1-independent stress responses in Arabidopsis.
本文通过对拟南芥 flu1-1/ex1 突变体进行前向遗传筛选,发现被广泛使用的 flu1-1 并非零功能突变体,而是一个“弱等位基因(Weak Allele)”。研究揭示了叶绿体单线态氧(1O2)在过量产生时,能够通过超越 SAFE1 的抑制作用,触发不依赖于 EX1 的逆行信号通路和细胞程序性死亡(PCD)。
TL;DR
中国农业大学王良省团队在《New Phytologist》发表最新研究,颠覆了植物学界对经典突变体 flu1-1 的认知。研究发现 flu1-1 仅是 FLU 基因的一个“弱等位基因”,而真正的 FLU 敲除(KO)会产生过量的单线态氧(1O2),这种高剂量的 1O2 能够绕过经典的 EX1 感应器,直接诱发细胞死亡和复杂的逆行信号响应。
历史回响与认知的盲区
在植物光合作用的研究中,flu(fluorescent)突变体一直是被用来研究单线态氧(1O2)的“金标准”工具。传统理论认为,FLU 蛋白在黑暗中抑制原叶绿素酯(Pchlide)的合成;当 flu 突变后,植物在黑暗中积累过量 Pchlide,光照下瞬间产生 1O2。而 EX1(EXECUTER1)蛋白被认为是 1O2 的唯一感应器——没有 EX1,1O2 爆发就不会导致植物死亡。
然而,本研究的动机来自于一个反直觉的筛选实验:作者在 flu1-1/ex1(理应不死亡)的背景下,竟然筛到了重新变黄死亡的突变体。这暗示了在 EX1 之外,一定存在另一条受 1O2 调控的“隐形通路”。
核心发现:弱等位基因的秘密
通过图位克隆,作者震惊地发现,这些新的回复突变体(mut1, mut2)绝大部分竟然是 FLU 基因本身发生了第二次突变。
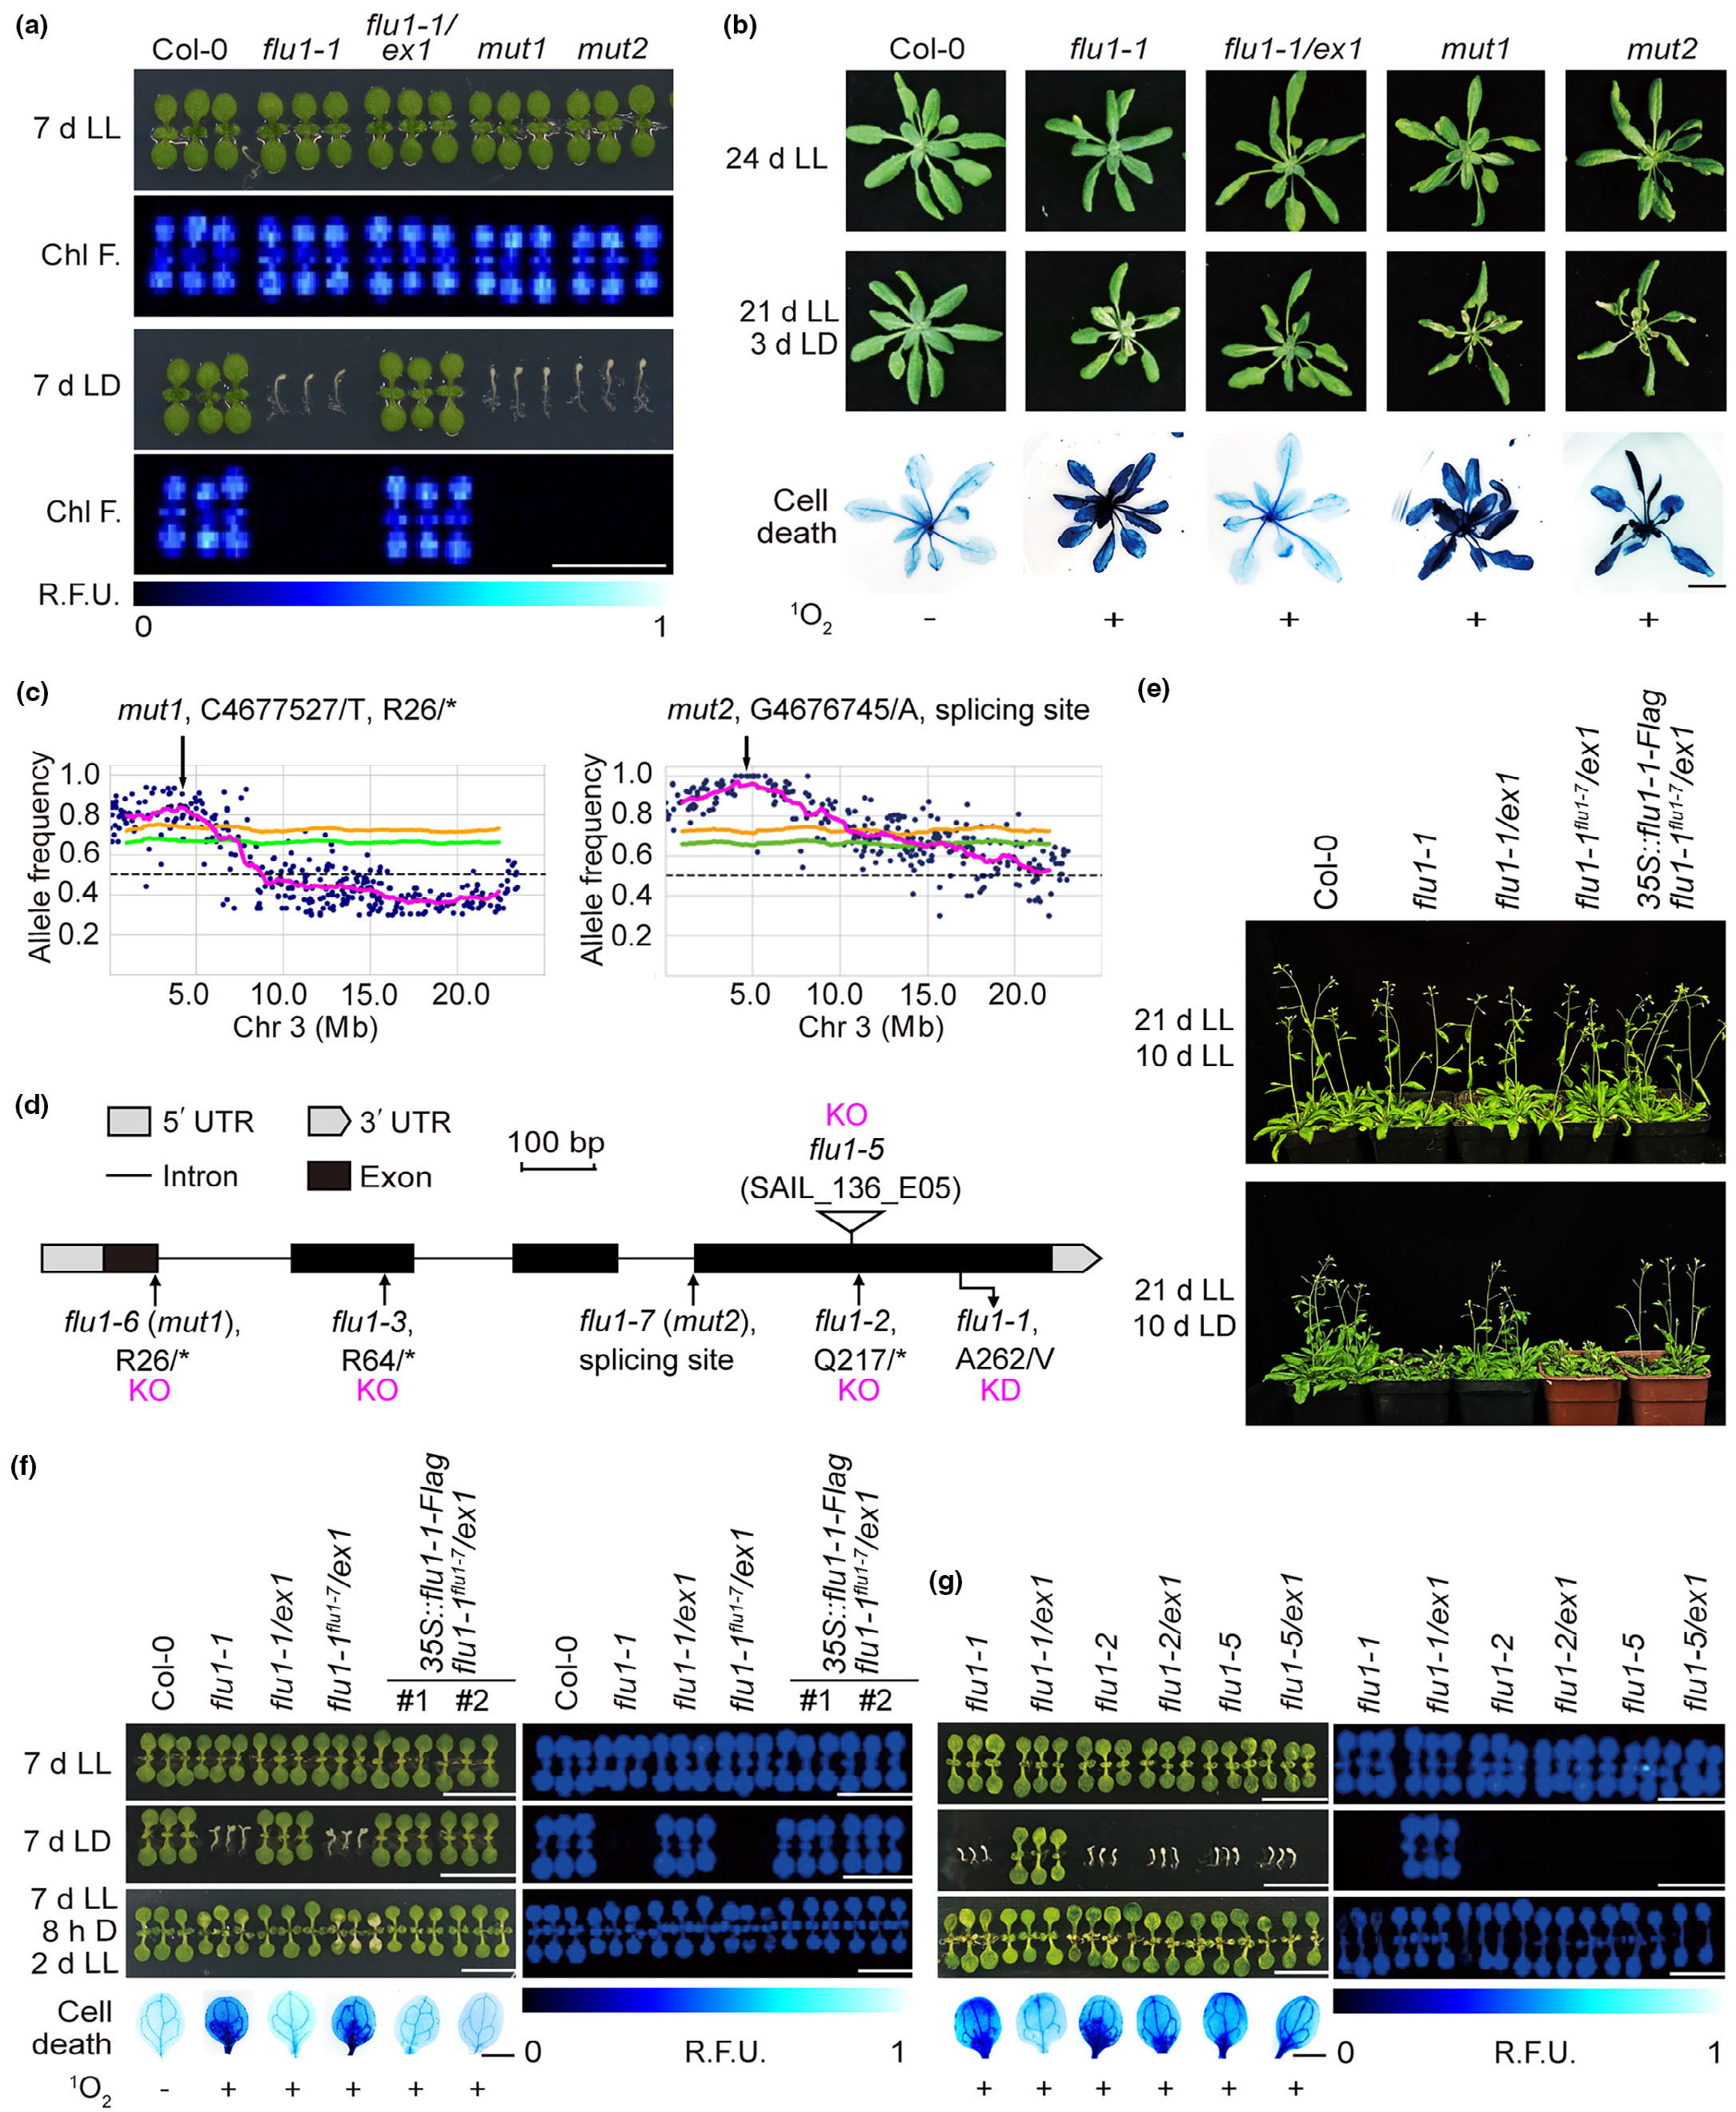
为什么 flu1-1 骗了我们这么多年?
- 弱结合力:AlphaFold3 三维结构预测显示,
flu1-1(A262V 突变)并没有让 FLU 蛋白消失,而是减弱了它与限速酶 GluTR 的结合亲和力。 - 残留功能:由于这种“弱结合”,
flu1-1在黑暗中仍保留了部分抑制能力。 - 剂量差异:真正的 FLU-KO 产生的 Pchlide 和 1O2 远高于
flu1-1。
核心机制:超越 EX1 的 1O2 信号
研究人员发现,当 1O2 浓度超过某个阈值时,即便没有 EX1 蛋白,植物依然会启动大规模的转录重新编程。
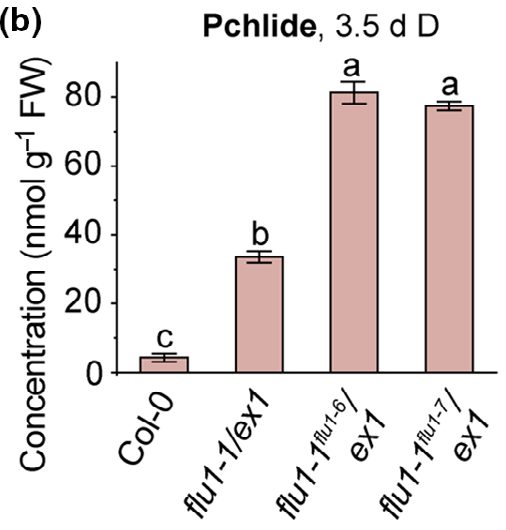
raSORGs 的崛起
作者定义了一组被称为 raSORGs(reactivated Singlet Oxygen-Responsive Genes)的基因。这些基因在 FLU-KO 中由于 1O2 极度过量而重新被激活。GO 分析显示,这些基因主要涉及缺氧响应(Hypoxia)、ROS 防御和防御反应。
酶促脂质过氧化的新证据
1O2 的作用通常被视为纯粹的氧化破坏(非酶促 LPO),但本研究通过定量分析 13-HOT 和 茉莉酸(JA) 发现,高剂量的 1O2 实际上诱发了受 LOX 酶调控的酶促脂质过氧化。这意味着 1O2 在此时扮演了“信号分子”而非仅仅是“毒素”。
结论与洞察
本工作不仅修正了一个经典的遗传学模型,更引入了 能量/胁迫阈值 的概念。
- 低/中剂量 1O2:依赖 EX1 系统检测,触发温和的逆行信号。
- 高剂量 1O2:超越感应器极限,通过 SAFE1 抑制失效及酶促过氧化途径,直接触发剧烈的 PCD。
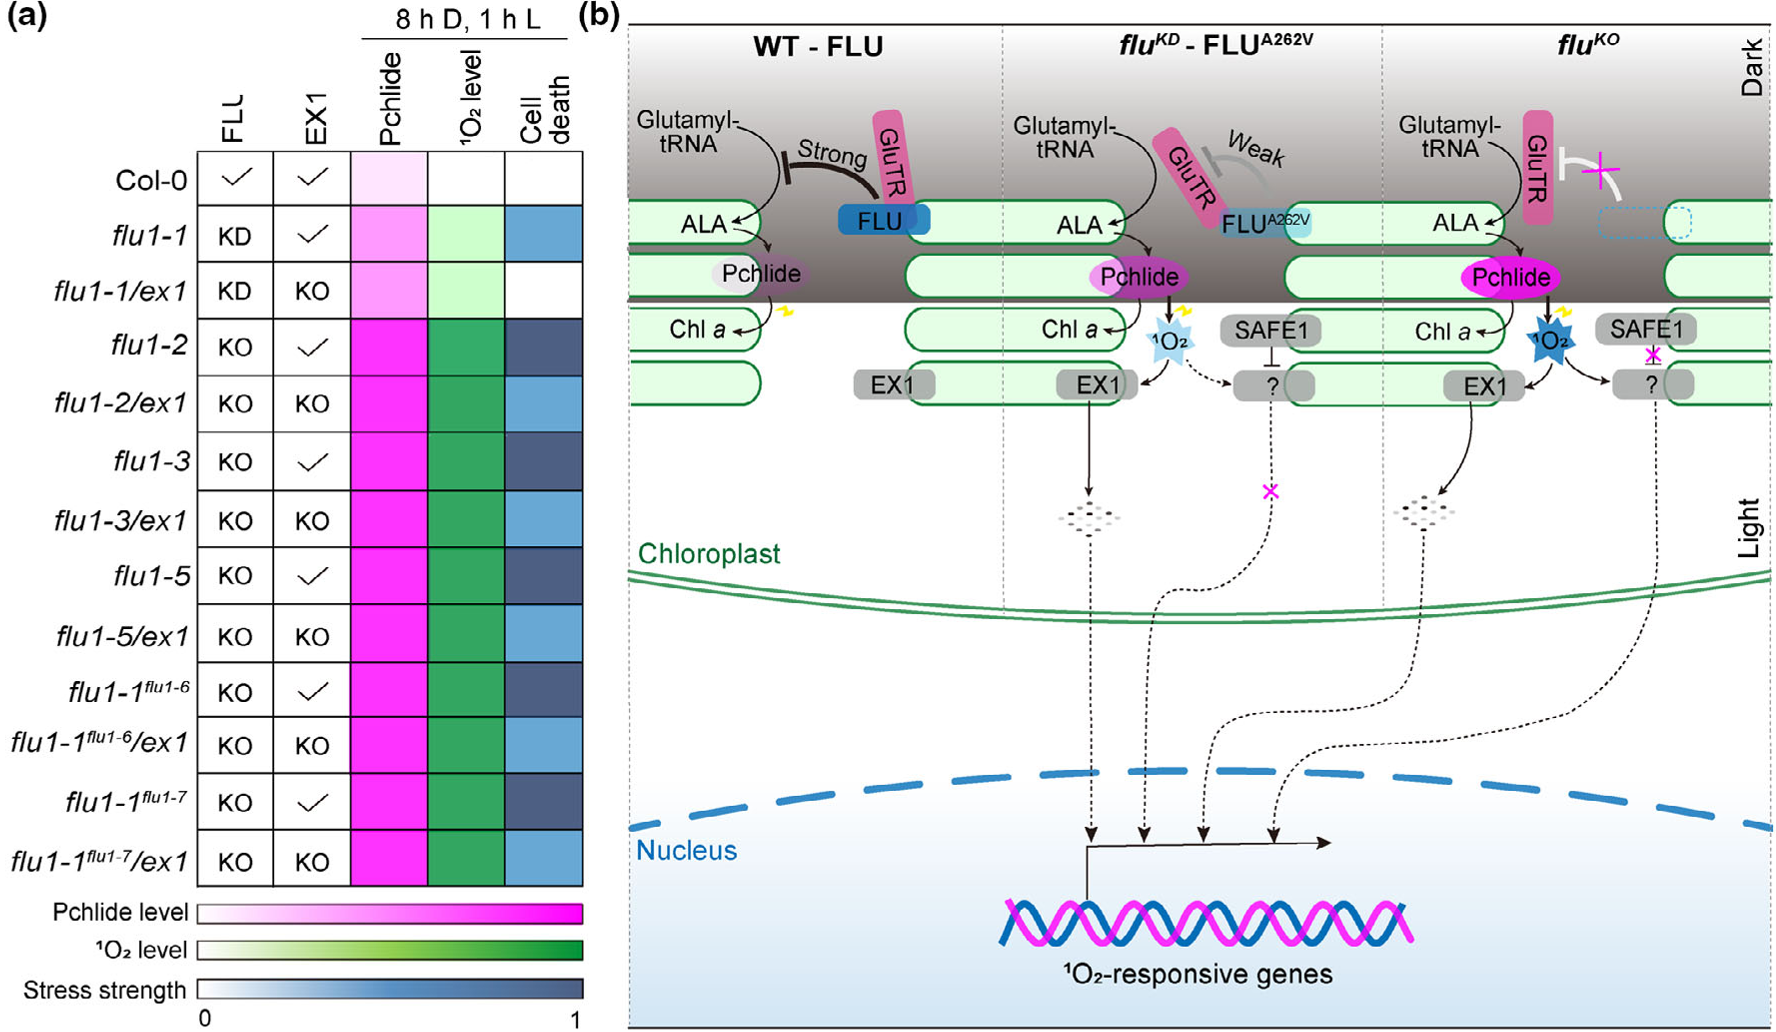
对于未来的作物改良而言,这一发现提示我们在筛选抗逆品种时,不能仅关注单一感应(如 EX1),更需审视那些在极端条件下被激活的、具有鲁棒性的备用信号通路(如 SAFE1 调节通路)。